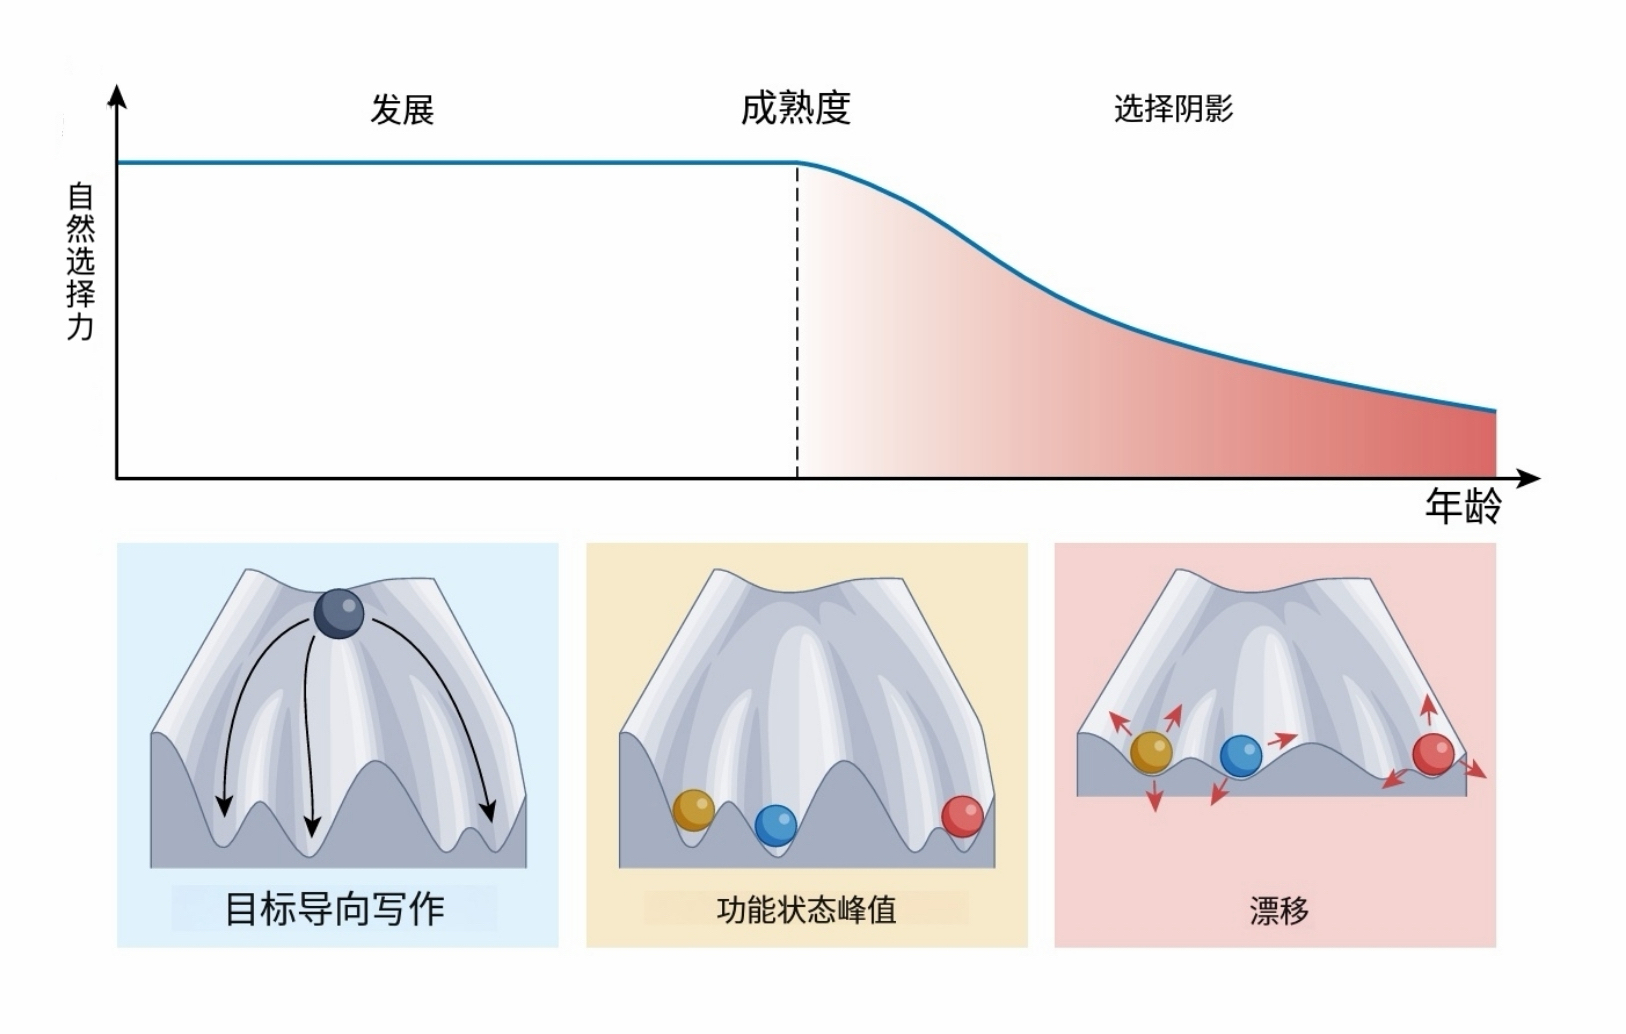
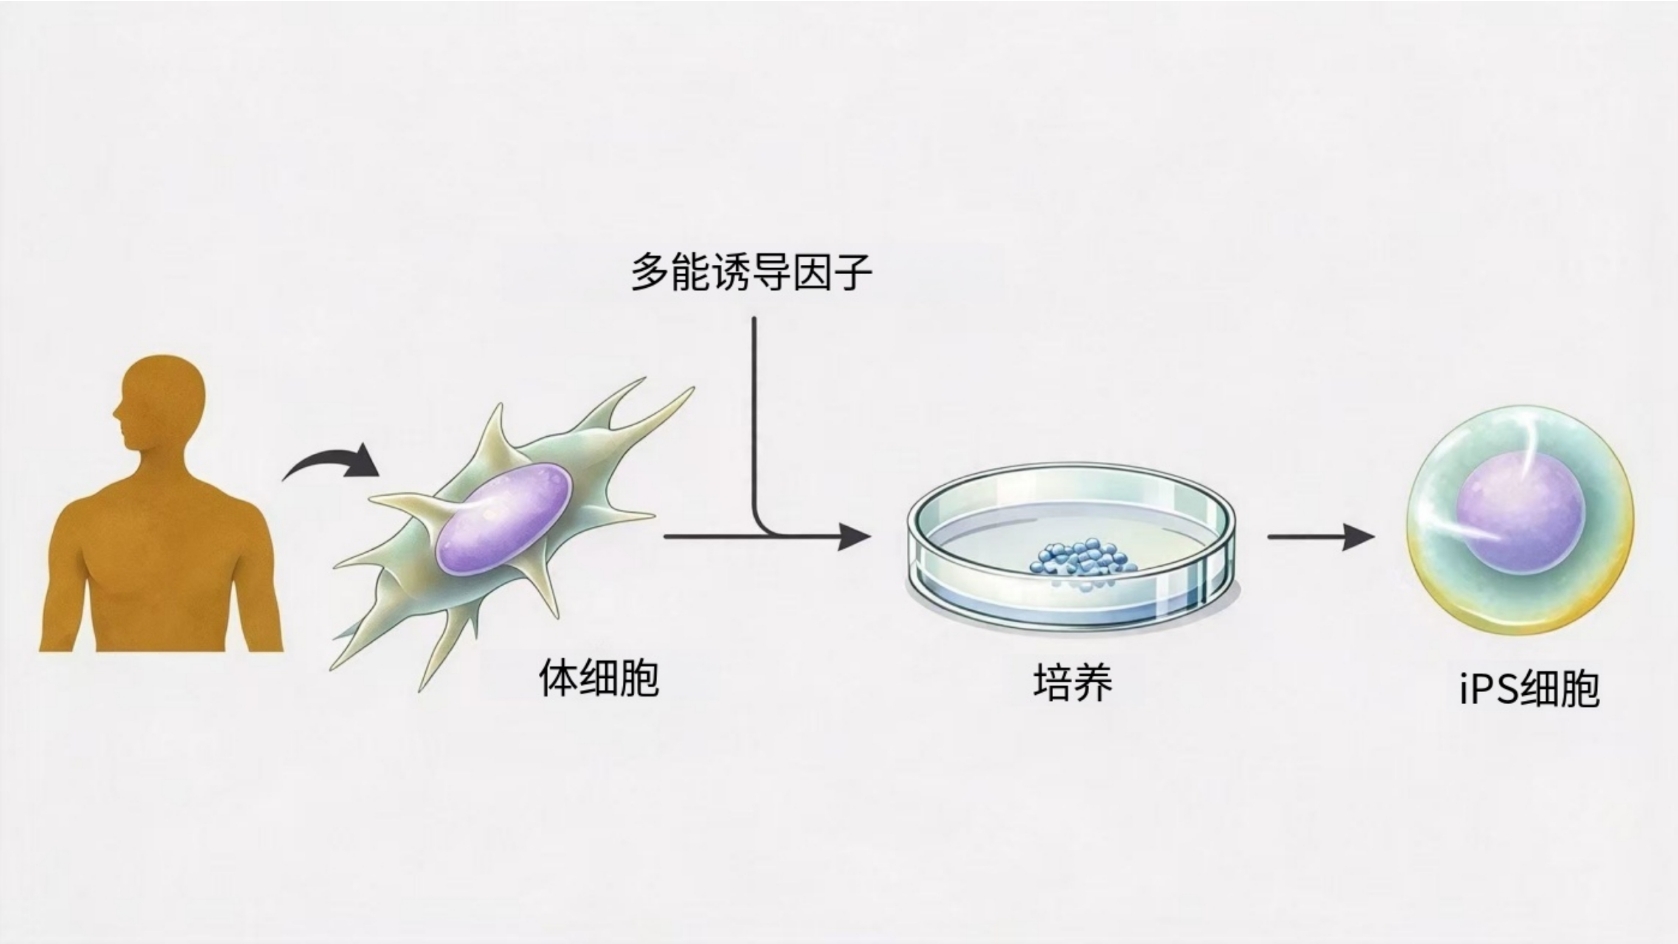
我们身体里的细胞,每天都有新的诞生,也有旧的死去,更迭不息。但几十年下来,肝细胞还是肝细胞,神经元还是神经元,这其实很不容易。 细胞每天都会遇到各种干扰:炎症、压力、代谢波动、信号分子来来去去。但细胞又没有大脑,怎么会在各种干扰下仍“记得”自己是谁?这是因为,细胞中有一套长期约束的框架告诉它:哪些基因可以开,哪些不该开,以此维持细胞身份。 但衰老会让这种身份逐渐模糊,导致细胞去分化(如阿尔茨海默病)、驱动慢性炎症等。为什么细胞会慢慢开始“记不清自己是谁”? 近期,一篇发表在国际顶刊《Nature》上的文章提出了一种解释:衰老,可能不仅是分子损伤的不断累积,也是细胞在漫长岁月中逐渐“忘了自己是谁”的去渠化过程[1]。 这篇文章主要说了些什么?作者把细胞里的调控规则分成三层,每层都有自己的时间尺度。 包括:信号、压力、炎症因子快速变化,转录因子结合上来又掉下去。比如,你今天紧张、发炎、运动,都会让这一层产生波动。 细胞健康时,可以在静息、激活、应激这些状态之间来回切换。 这一层决定细胞中哪些基因有资格被打开,哪些区域需要被封锁。包括:染色质结构、DNA上的化学标记、细胞核里的空间组织,是影响细胞衰老的核心。 这三个层次是怎么影响细胞变老的?文章给出一个解释框架: 发育期:形态发生素梯度、系统信号、时间线索一起协调,把“你是什么细胞”高保真地写进染色质。 每次在快层发生的炎症、代谢波动、DNA 损伤、强烈的转录激活,都会冲击慢层,留下一点小偏差。年轻时,维护机制还能把这些偏差大致修回去。但随着扰动不断累积、维护能力有限,小错误开始叠加,衰老就逐渐显现出来了。 作者还指出,急性压力可以让表观年龄短暂升高,压力解除后又恢复,说明维护系统在年轻时确实有足够的缓冲能力,但反复冲击会逐渐消耗这种缓冲[2]。 简单来说,发育时是全局、高保真地“写”;成年后是局部、低保真地“修”。这种不对称,被作者称为衰老的架构起点,而细胞身份约束逐渐松动的过程则被命名为“表观遗传去渠化”。 即发育期细胞命运被渠化在稳定的河道里,成年后各种扰动因素反复冲击,使河道逐渐变浅,细胞的身份边界便不再那么清晰,逐渐出现身份漂移和功能衰退。 ps:什么是“渠化”? 如果只是理论推演,这个框架不会有多大的分量。真正让它有说服力的,是已有数据与它高度吻合。在会分裂的体细胞组织里,年龄增长带来的DNA甲基化增加,大约九成集中在多梳抑制复合物2(PRC2)结合的低甲基化区域。 PRC2可以理解成细胞里的“沉默管家”,负责在一些不该打开的基因旁边做上标记。这些被PRC2看守的区域,在年轻时通常保持低甲基化;但随着年龄增长,PRC2的保护性占位减少,甲基化水平逐渐升高。而且,这一规律在不同物种间高度保守。 基于此,2024年的一项研究发现,直接取这些区域的平均DNA甲基化水平,就能跨组织、跨物种地衡量细胞的生物学年龄,甚至能区分不同的衰老干预是否真的在细胞层面起了作用[4]。 这也解释了为什么表观遗传时钟能跨组织、跨物种测年龄,它读的很可能就是慢层结构的磨损程度[5]。 以神经元细胞为例,它的寿命与个体寿命基本一致,几乎不分裂,却要维持身份几十年,因此它非常依赖慢层维护。 帮神经元维持身份边界的PRC2,可以在神经元中抑制非神经元基因和发育程序[6,7]。2016年《自然·神经科学》上的一项研究显示,PRC2能沉默与神经退行性变相关的基因,但PRC2功能异常则会让这些基因被释放。 而在衰老过程中,PRC2控制的区域会更脆弱、更易松动[8]。其背后的原因在于,随着年龄增长,维护相关的酶功能逐渐下降,PRC2的抑制性标记被侵蚀,一系列蛋白质稳定性受损,形成一个自我强化的退化循环,进而加速tau蛋白磷酸化(阿尔茨海默病的病因之一)、突触功能障碍和兴奋毒性脆弱性,最终导致神经退行性变。 这说明,当慢层机制逐渐松动时,细胞很难维持自己的身份边界,可能会滑向混合、不稳定的状态,而这种状态与功能衰退之间存在合理关联。 从进化角度看,自然选择在繁殖之后会变弱,这叫“选择阴影”。通俗点说,自然选择关心的是生物体能不能顺利活到繁殖、成功留下后代、并把后代带到能独立,对生命晚期的维护能力就管得比较少。 所以,身体只要撑到能发育、能繁殖就够了,等发育一结束,维护机制受到的选择压力变小,细胞对自己的身份约束就会慢慢松下来。在这个框架里,衰老并不需要主动去做什么,等着维护出错就行了。 如果这个框架成立,那么衰老干预至少有两个值得探索的方向: 可能减缓慢层漂移,但不一定逆转。 比如,多项研究显示,热量限制可以延缓衰老、延长寿命。作者推测,长期热量限制会降低代谢通量,可能让PRC2结构相对更稳定,减缓相关区域的甲基化增加幅度,从而减缓慢层侵蚀。 也就是说,慢层磨损的速率可能被代谢状态调节。但这就像给老城市多加维修工,能延缓破败,但很难恢复最初的规划。 重新启动发育期的“书写”程序,可能会真正逆转一些衰老特征。 理论上,完全重编程技术可以让体细胞回到可分化的干细胞状态,形成诱导多能干细胞(iPSC),但其“本质上具有致瘤性,可以形成畸胎瘤”[9]。 虽然目前有研究证实,部分重编程在动物模型中确实能逆转一些衰老标志[10],但其风险也很明确:失去细胞身份、基因组不稳定、肿瘤发生[11]。 我们通常把衰老想象成磨损:DNA损伤积累、蛋白质出错、细胞器效率下降。这些当然都在发生,但同样不可忽视的是,细胞在几十年里,一边被各种压力冲击,一边只能进行不完美的维护,慢慢模糊了自己的身份。
三套“时钟”,最慢的那一层最重要
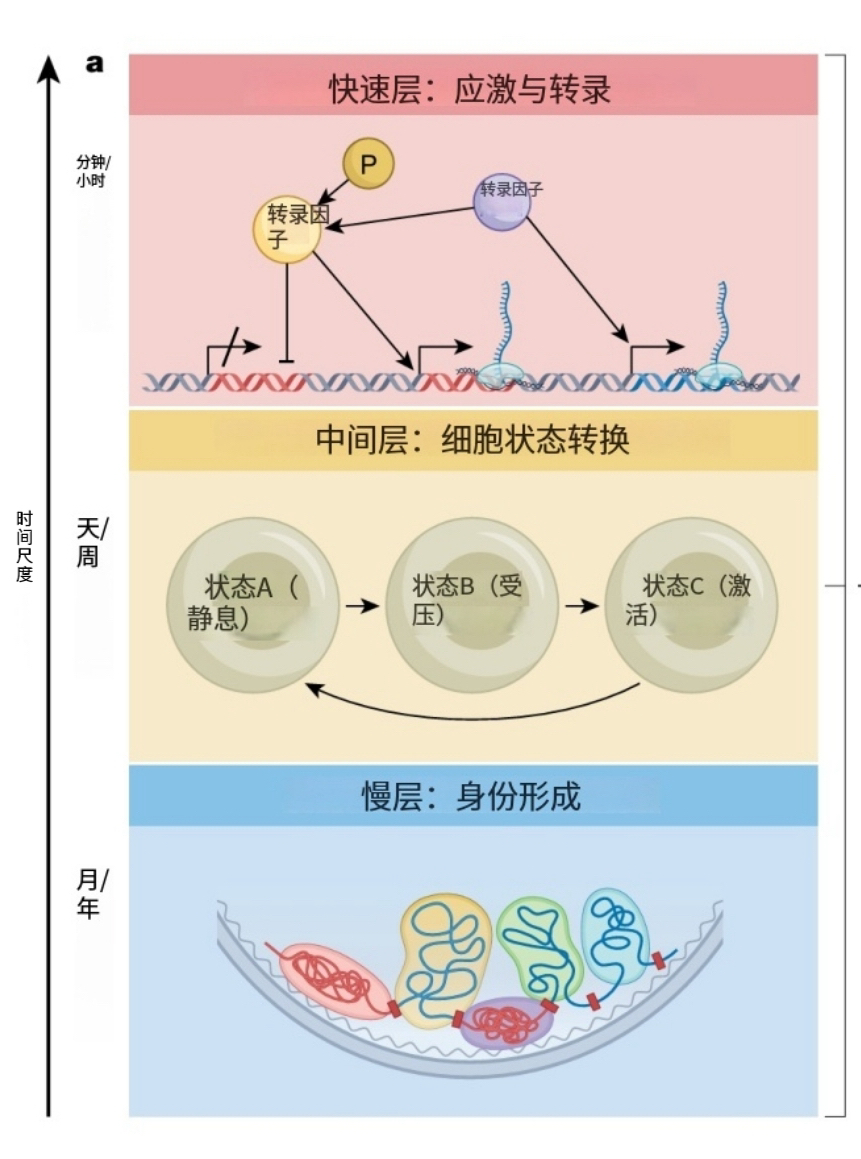
第一层是快层,秒到分钟级别。
第二层是中间层,天到周级别。
第三层是慢层,月到年级别。
发育期认真“写”,成年后只能“修”
成年期:发育程序完成后,细胞只能做局部修补工作,而且维修本身就有误差。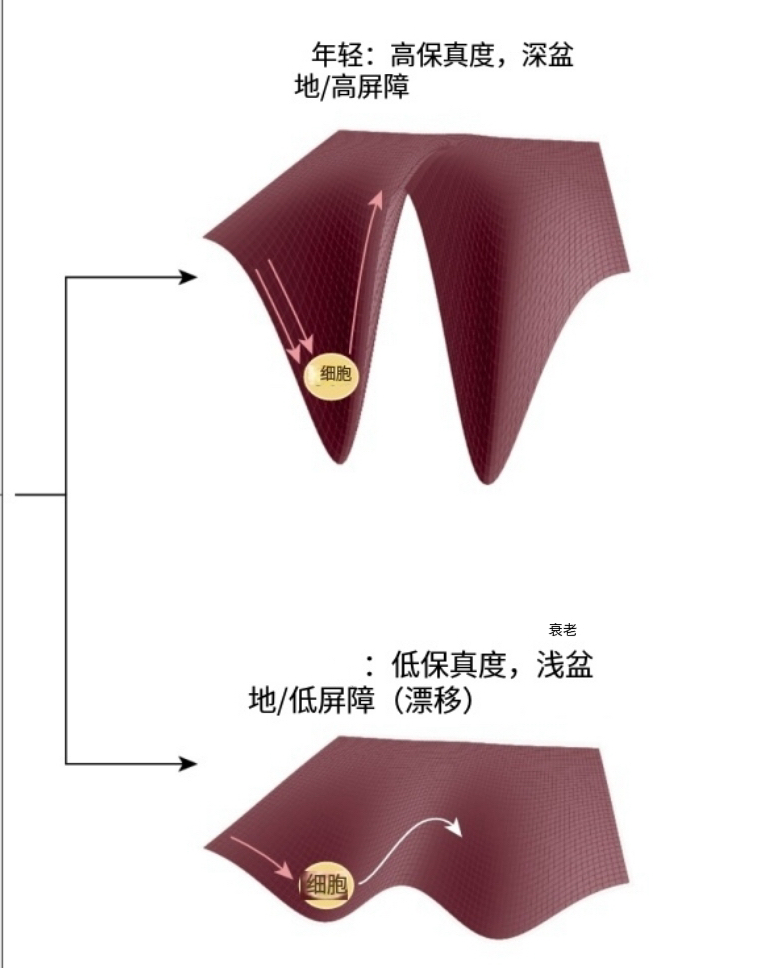
1942年,“表观遗传学”这个词的创造者康拉德·哈尔·沃丁顿(Conrad Hal Waddington)教授,提出了“渠化”概念,即细胞发育就像一颗小球从山坡滚下,山坡上深浅不一的沟渠会引导小球最终落入特定的山谷,这个山谷就代表一种稳定的细胞命运。沟渠越深,意味着渠化程度越高,细胞身份就越稳定[3]。衰老最集中的地方,指向同一区域
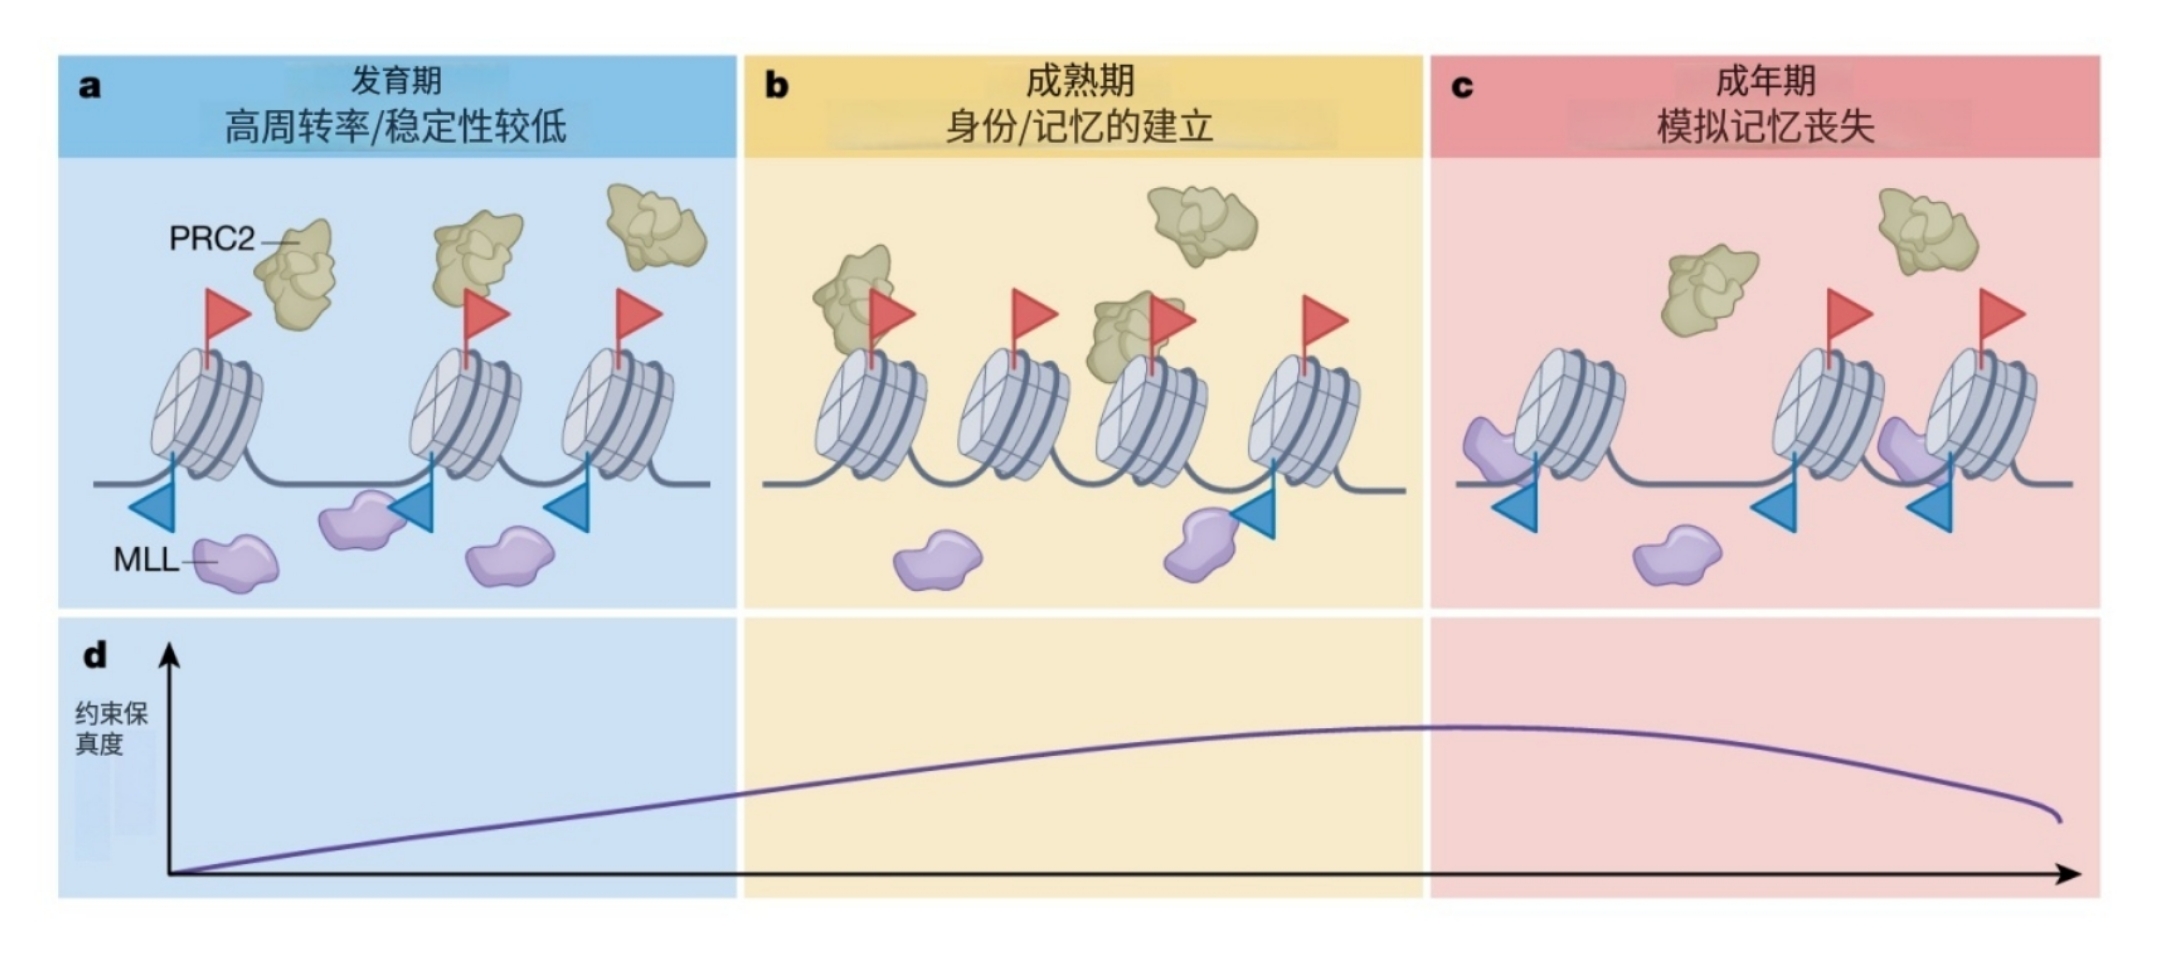
用神经退行性变理解慢层失守
为什么进化没有“设计”防衰老程序?
这篇文章的意义是什么?
增强成年后维护功能
让成熟细胞回到“发育期”
参考资料: [1] Yücel AD, Molière A, Gladyshev VN. Written in development and lost in ageing: the grammar of cellular identity. Nature. 2026;658(8134):45-54. doi:10.1038/s41586-026-10955-0 [2] Poganik JR, Zhang B, Baht GS, et al. Biological age is increased by stress and restored upon recovery. Cell Metabolism. 2023;35(5):807-820.e5. doi:10.1016/j.cmet.2023.03.015 [3] Waddington CH. CANALIZATION OF DEVELOPMENT AND THE INHERITANCE OF ACQUIRED CHARACTERS. Nature. 1942;150(3811):563-565. doi:10.1038/150563a0 [4] Moqri M, Cipriano A, Simpson DJ, et al. PRC2-AgeIndex as a universal biomarker of aging and rejuvenation. Nature Communications. 2024;15(1):5956. doi:10.1038/s41467-024-50098-2 [5] Lu AT, Fei Z, Haghani A, et al. Universal DNA methylation age across mammalian tissues. Nature Aging. 2023;3(9):1144-1166. doi:10.1038/s43587-023-00462-6 [6] Von Schimmelmann M, Feinberg PA, Sullivan JM, et al. Polycomb repressive complex 2 (PRC2) silences genes responsible for neurodegeneration. Nature Neuroscience. 2016;19(10):1321-1330. doi:10.1038/nn.4360 [7] Del Blanco B, Niñerola S, Martín-González AM, et al. Kdm1a safeguards the topological boundaries of PRC2-repressed genes and prevents aging-related euchromatinization in neurons. Nature Communications. 2024;15(1):1781. doi:10.1038/s41467-024-45773-3 [8] Pérez RF, Tezanos P, Peñarroya A, et al. A multiomic atlas of the aging hippocampus reveals molecular changes in response to environmental enrichment. Nature Communications. 2024;15(1):5829. doi:10.1038/s41467-024-49608-z [9] Watanabe T, La Shu S, Del Rio-Espinola A, et al. Evaluating teratoma formation risk of pluripotent stem cell-derived cell therapy products: a consensus recommendation from the Health and Environmental Sciences Institute’s International Cell Therapy Committee. Cytotherapy. 2025;27(9):1072-1084. doi:10.1016/j.jcyt.2025.04.062 [10] Lu JY, Tu WB, Li R, et al. Prevalent mesenchymal drift in aging and disease is reversed by partial reprogramming. Cell. 2025;188(21):5895-5911.e17. doi:10.1016/j.cell.2025.07.031 [11] Ahmad U, Kumar D, Faiyazuddin Md. Can IPSCs turn back time? Prospects and pitfalls in age reversal. Current Stem Cell Research & Therapy. 2025;21(1):26-33. doi:10.2174/011574888x400606250721112037